

摘要
熱量限制(caloric restriction, CR)是跨物種最穩固的延壽與健康壽命介入,但臨床上一直有個沒被好好回答的問題:我們看到的「生物老化指標改善」,到底有多少只是「變瘦」的副作用?如果答案幾乎全是體重,那麼任何能讓病人變瘦的手段(GLP-1 受體促效劑、減重手術、甚至單純的熱量赤字)都應該能複製同樣的效果;如果不是,那麼「少吃」本身就有獨立於體重的訊號效益,而我們需要一把能夠捕捉這條路徑的量尺。
2026 年 GeroScience 刊登的一篇匯總分析,把這個問題第一次用中介分析(mediation analysis)的形式講清楚。研究者整合 7 個以老年人為對象、含 CR 介入臂的隨機對照試驗(randomized controlled trial, RCT),共 829 人(CR 組 494 人,佔 59.6%),追蹤期平均 7.51 個月,以一個由 CRP、IL-6、cystatin C、insulin、GDF-15、TNF-R1 六項生物標記構成的複合生物老化指標(採五分位加總分,quintile sum score)作為結果變項。結果顯示:
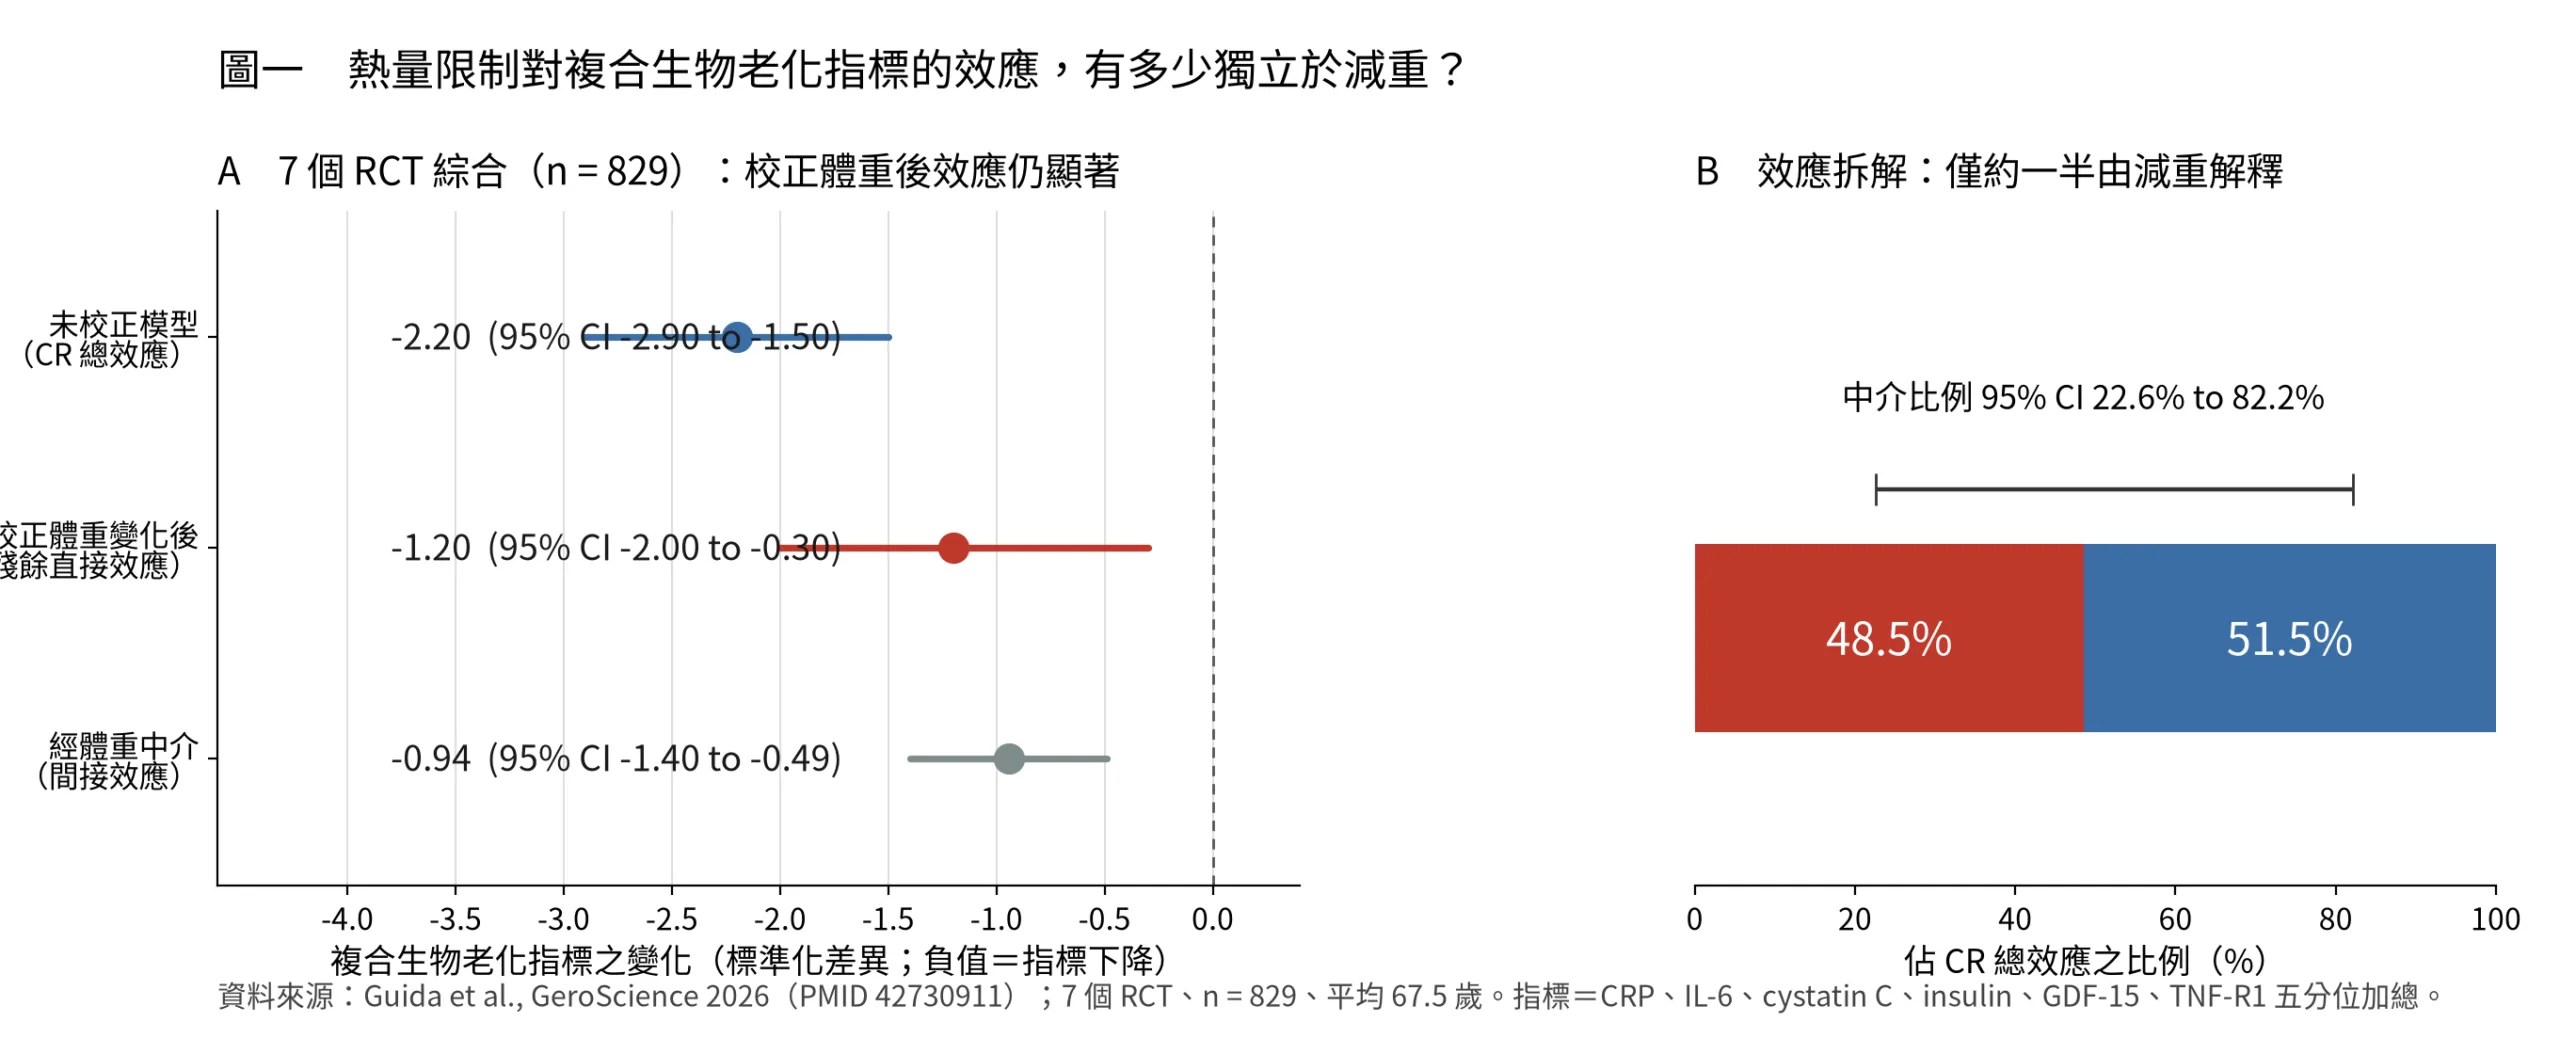
- CR 對複合指標的效應為 −2.2(95% CI −2.9 至 −1.5)。
- 把體重變化放進模型後,效應縮小到 −1.2(95% CI −2.0 至 −0.3),仍然顯著。
- 經體重中介的間接效應為 −0.94(95% CI −1.40 至 −0.49)。
- 中介分析估計,只有 48.5%(95% CI 22.6% 至 82.2%)的 CR 效應可以由減重解釋。
換句話說,在這個世代的證據裡,「少吃」對生物老化指標的作用,大約一半靠減重、另一半不靠減重。但信賴區間從 22.6% 一路跨到 82.2%,也誠實地說明這個比例目前的精確度仍然有限。本文逐篇整理 2024 年 10 月以後發表的相關文獻全文,並在最後給出可操作的臨床建議。
一、背景:為什麼「減重」可能是一個不完整的解釋
1.1 老化是可調控的過程
Geroscience 假說的核心主張是:老化本身是一個可被介入的生物過程,針對老化機制的介入可以同時延後多種年齡相關慢性病的發生。這個假說之所以能從實驗室走進臨床討論,主要靠兩類證據:一是模式生物中單一基因或單一途徑的介入可以延長壽命;二是人類身上出現了一組「可測量的老化生物標記」,讓我們能在相對短的時間內觀察介入是否真的動到了老化的底層。
而在所有營養相關介入中,CR 的地位最特殊。限制攝取熱量但不造成營養不良,在多種物種中都能延長壽命並改善健康指標,且效果與限制的程度呈正相關。問題在於:實驗室裡的 CR 幾乎一定伴隨體重與脂肪量下降,兩個變項在生物學上高度糾纏。當我們觀察到 CR 組的發炎指標下降、胰島素敏感度改善,最直觀的解釋是「因為他們變瘦了、脂肪組織分泌的發炎物質變少了」。這個解釋在肥胖族群身上非常有說服力,但在非肥胖族群身上就顯得不足。
一個常被忽略的觀察值得記住:在基因多樣化的遠交系小鼠中,在 CR 條件下仍能維持較高體重與脂肪量的小鼠,往往活得最久。同樣的熱量赤字,落在不同個體身上會走進不同的下游路徑——這正是本文要拆解的核心。
1.2 人體 CR 試驗的形狀與限制
人體 CR 的經典證據來自 CALERIE(Comprehensive Assessment of Long-term Effects of Reducing Intake of Energy)試驗。CALERIE-2 是一項多中心 RCT,納入 220 位 BMI 22.0 至 28.0 kg/m²、非肥胖的健康成人,隨機以 2:1 分配至「目標減少 25% 熱量攝取」的 CR 組或維持原本進食量的對照組,介入期長達 24 個月。它證明了長期中度 CR 在人類身上是可行的,並帶來血壓、低密度脂蛋白膽固醇、TNF-α、空腹胰島素等指標的持續改善。
但 CALERIE-2 有一個結構性限制:它不是「等熱量」或「等體重損失」的比較。CR 組變瘦了,對照組沒有,因此從這個試驗本身無法把「熱量赤字」與「體重下降」分開。要回答本文的問題,只能靠統計上的拆解,或找到體重變化相同但介入不同的比較——這兩種策略在 2024 年之後的文獻裡都出現了。
1.3 為什麼醫療從業人員要在意這個問題
這個問題不是學術趣味,它有直接的行為後果。
第一,它決定了成功的定義。如果 CR 的效益幾乎全部經由減重,那麼臨床上的合理做法就是:只要能達到並維持體重下降,用什麼方法都可以,重點放在體重與腰圍的追蹤。但如果有一半的效益走的是不經體重的路徑,那麼「體重沒動」就不能等同於「介入失敗」,病人可能已經在生物層面獲得改善,只是我們沒有量對東西。
第二,它決定了量尺的選擇。傳統上我們用體重、BMI、腰圍追蹤減重介入。這些指標對「營養感測路徑」完全不敏感。如果我們只用體重當終點,就會系統性地低估這條路徑的價值。
第三,它直接關係到安全性。如果效益高度依賴減重,那麼在體重已經正常的族群(例如 CALERIE-2 的受試者)推動進一步減重,其風險效益比就很差——不只要面對骨質流失、肌肉流失、免疫功能與生殖功能的代價,還要承受體重回復後效益反轉的損失。後文會提到,體重回復確實會把一部分好處「收回」。
二、把問題問清楚:什麼叫做「獨立於減重」
2.1 中介分析的形式定義
在統計上,「有多少效益獨立於減重」可以被寫成一個中介模型。令 Y 為生物老化指標的變化,X 為是否被分配到 CR(0/1),M 為介入期間的體重變化。那麼:
- 總效應(total effect):X 對 Y 的效應,不控制 M。
- 間接效應(indirect effect,又稱中介效應):X 透過改變 M 而影響 Y 的部分,也就是「靠減重達成」的部分。
- 直接效應(direct effect):控制 M 之後 X 對 Y 的剩餘效應,也就是「不靠減重」的部分。
- 中介比例(proportion mediated)= 間接效應 ÷ 總效應。
讀這類分析時,有三個必須放在心上的前提:
(一)「直接效應」不等於「非減重的生物機制」。它只是模型設定之外無法解釋的殘餘。若量測方式不夠精細(例如只用體重而非 DXA 分離脂肪與瘦體組織),一部分真正由脂肪量變化造成的效應會被歸入「直接效應」,因而高估「獨立於減重」的比例。
(二)必須假設沒有未測量的中介—結果干擾因子。標準中介分析要求,在控制治療分配與共變項後,中介變項與結果之間沒有未測量的共同原因。這個假設無法用資料檢驗,只能靠研究設計與領域知識支持。對於「體重變化—發炎指標」這組關係來說,未測量的生活型態因子(睡眠、活動量、吸菸)是明顯的威脅。
(三)比例本身可以很不精確。中介比例的信心區間往往很寬。在本文的核心研究裡,48.5% 這個點估計對應的 95% 信賴區間是 22.6% 至 82.2%。這意味著「約一半」是目前最合理的描述,但我們不能宣稱這是一個穩定的常數,更不能把它當成一個可以套用到個別病人的數字。
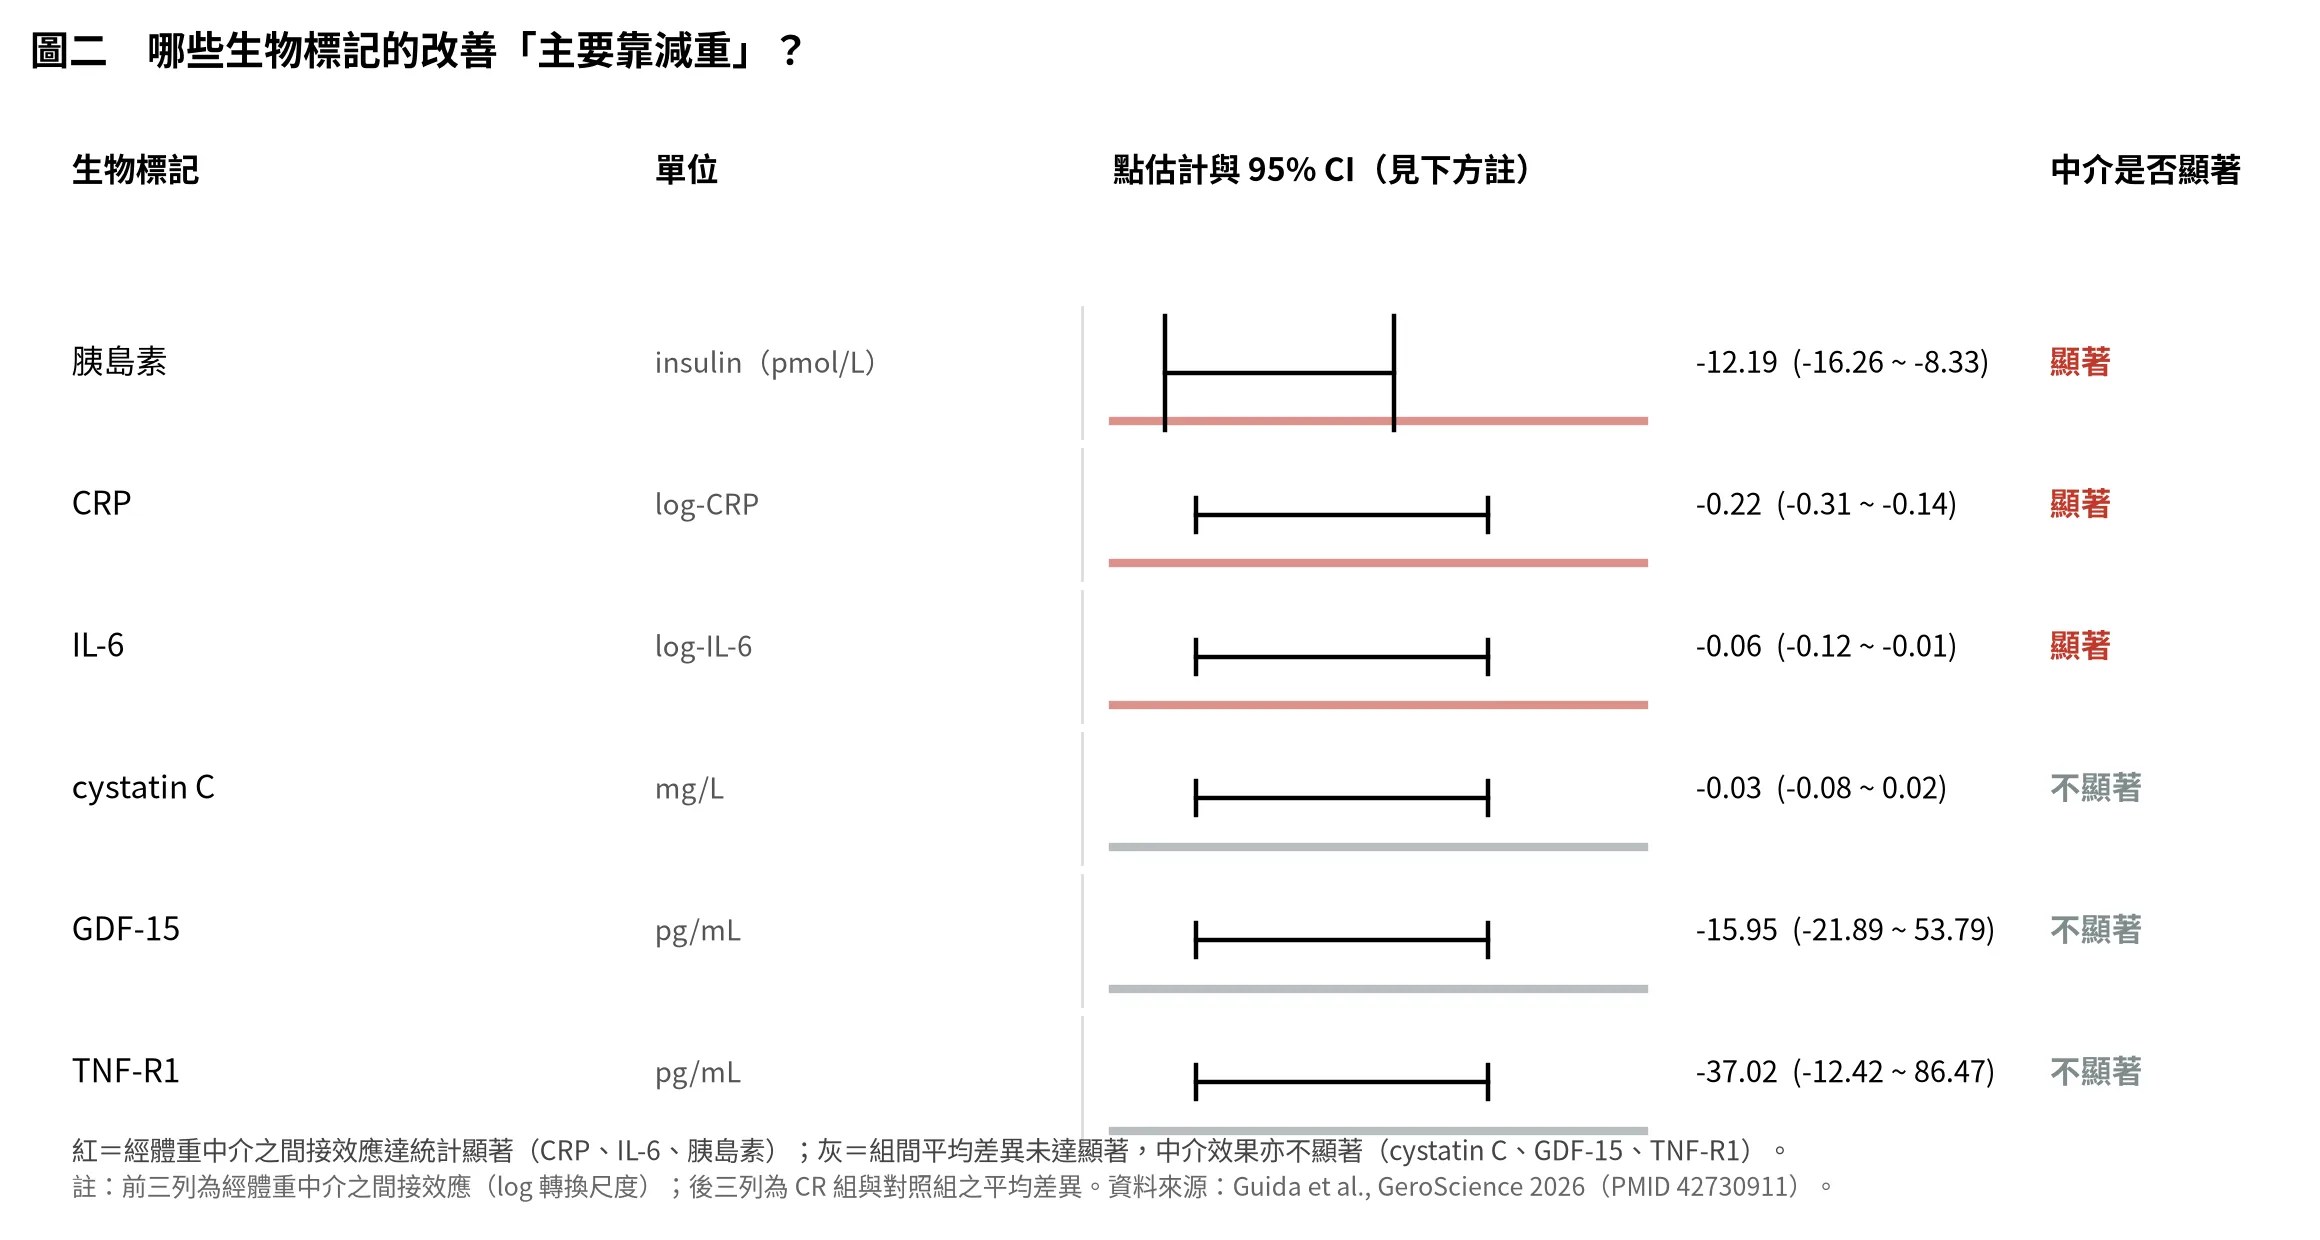
2.2 一個關鍵的機制區分:能量赤字 vs 營養感測
要理解為什麼會存在「不靠減重」的效益,需要回到細胞的能量感測網路。
當能量供給充足時,胰島素/類胰島素生長因子-1(insulin/IGF-1 signaling, IIS)路徑被活化,胺基酸充足時 mTORC1 被活化,合成代謝旺盛、自噬被抑制。老化過程中,mTORC1 的持續活化伴隨自噬功能受損,會造成受損蛋白與胞器累積,引發細胞壓力反應與老化細胞(senescent cell)堆積,並透過老化相關分泌表型(senescence-associated secretory phenotype, SASP)驅動慢性低度發炎。
反過來,當細胞能量狀態低落時,AMPK 被活化,SIRT1 活性上升,mTORC1 被抑制,自噬被誘發。這一組反應的啟動條件是「細胞感測到能量不足」,而不是「身體質量下降」。理論上,一個細胞可以在個體體重完全沒變的情況下,因為進食時間、蛋白質含量、碳水化合物可得性、或葡萄糖可用性的改變,而進入這組分解代謝、壓力適應的狀態。
這就構成了「不靠減重」這條路徑的機制基礎。它的一個直接推論是:間歇性斷食的價值可能不在於累積的能量赤字,而在於每一段禁食期間反覆啟動的感測訊號。後文關於間歇性斷食的人體證據,會反覆回到這個區分。
三、量尺:從單一生物標記到複合生物老化指標
3.1 為什麼單一生物標記不夠用
如果我們要用「生物老化指標改善」當作 CR 的成效證據,就必須面對一個技術問題:單一生物標記的訊噪比太低。
以 CRP 為例,它是最常用的發炎指標,但個體內變異大,受急性感染、睡眠、藥物(尤其是 statin)與測量誤差影響。IL-6 半衰期短、日內波動大,單次抽血的代表性有限。GDF-15 更複雜——它在肥胖者身上上升、在成功的減重手術後短期也上升,方向性難以解讀(見第 4.7 節)。TNF-R1 相對穩定,但效應量很小,需要很大的樣本數才能偵測到變化。
另一種做法是「把多個標記合併成一個指標」。合併有兩個好處:一是把不同單位(mg/L、pg/mL、pmol/L)標準化後加總,避免單位不一致的問題;二是把各標記中彼此無關的測量噪音互相抵消,提升訊噪比。代價是失去對特定機制的解析度——我們會知道「整體變好」,但不知道是哪個系統在改善。
3.2 核心研究的複合指標是怎麼組成的
本文討論的核心研究採用的是五分位加總分。做法是:對六項生物標記各自計算介入後的變化量,將變化量依五分位排序、給 0 至 4 分,再將六項分數加總(理論範圍 0 至 24 分)。使用「變化量的排名」而非「原始數值」有兩個目的:消除各標記間單位的差異,並且降低極端值對整體分數的影響。分數越低代表生物標記改善越多。
這六項標記的選擇並非隨機,它對應到三條與老化密切相關的生物軸線:
| 生物軸線 | 生物標記 | 在老化生物學中的意義 |
|---|---|---|
| 慢性發炎(inflammaging) | CRP、IL-6 | 與後續罹病率與死亡率的關聯最穩固;可由 SASP 驅動 |
| 胰島素/IGF-1 營養感測 | 胰島素(insulin) | IIS 路徑活性的周邊代理指標;與代謝疾病風險直接相關 |
| 細胞壓力反應與器官功能 | GDF-15、cystatin C、TNF-R1 | 粒線體/整合性壓力反應、腎絲球過濾、TNF 訊息活性 |
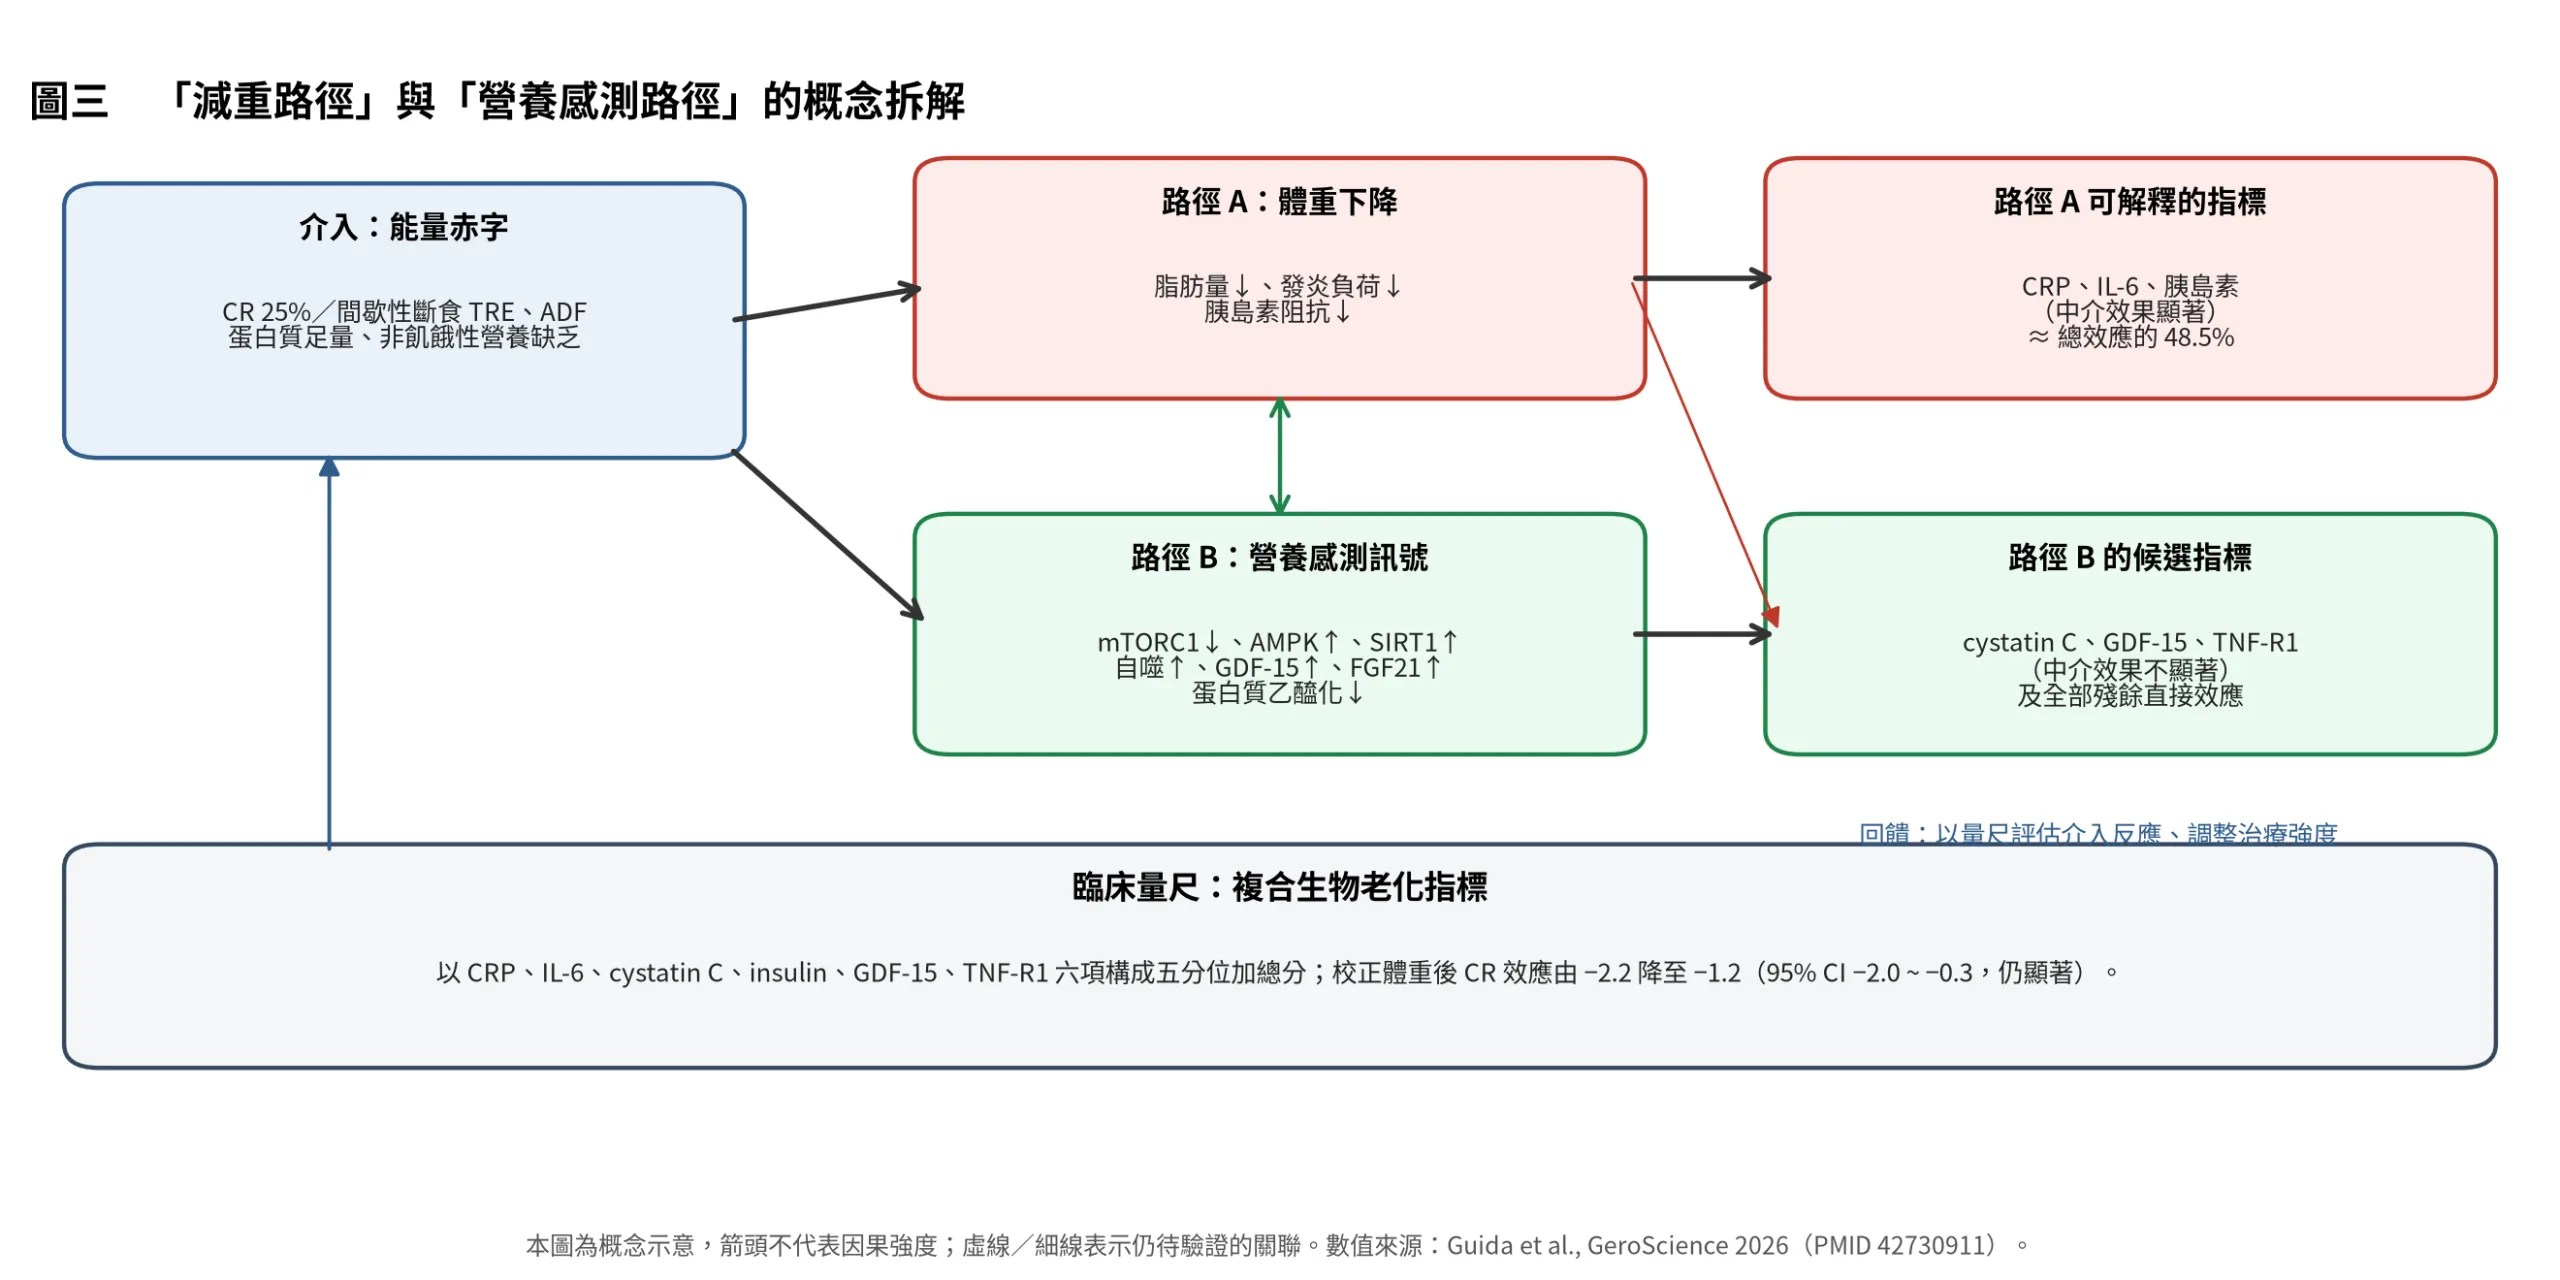
值得注意的是,這六項標記中,只有三項(CRP、IL-6、insulin)的效應在統計上顯著由體重中介,另外三項(cystatin C、GDF-15、TNF-R1)的中介效果並不顯著(見圖三)。這本身就很說明問題:如果一個複合指標裡有半數成分的變化「不是靠減重」,那麼把這些成分併入同一個指標之後,剩餘的直接效應就不難理解了。
3.3 表觀遺傳時鐘與其他新興量尺的位置
過去十年最受矚目的生物老化量尺是 DNA 甲基化為基礎的表觀遺傳時鐘(epigenetic clock)。第一代時鐘(如 Horvath、Hannum)以實際年齡為訓練目標,主要反映年齡本身;第二代時鐘(如 PhenoAge、GrimAge)改以發病率與死亡率為訓練目標,與臨床結果的關聯更強;第三代則進一步區分了「年齡估計值」與「老化速率」,最常被討論的是 DunedinPACE,它輸出的是「每過一年,生物層面老化幾年的速率」。
這些量尺可在單次抽血中取得、對介入有潛在反應性,但目前仍屬研究性生物標記,對短期介入的反應性高度不確定。既有方法學評論指出,平台的批次差異、生理時鐘與急性壓力都可能造成時鐘值暫時波動,因此「時鐘值變化」不一定代表「臨床結果改善」。第 4.5 節會看到正反兩面的實證。
除表觀遺傳時鐘外,2024 年後文獻還出現了幾個替代量尺:質譜代謝體為基礎的代謝體年齡(metabolomic age, mAge)、IgG 醣基化為基礎的 GlycAge、以及以常規生化指標訓練的 CardioMetAge。它們對短期介入可能比甲基化時鐘更敏感,但與臨床硬終點的連結仍不如傳統風險因子穩固。
四、最新研究成果
以下按主題整理 2024 年 10 月以後發表的文獻。每篇均標示研究設計、樣本數與可取得全文的層級,以便讀者自行評估證據強度。依本刊慣例,動物與細胞研究會明確標示,不與人體證據混列。
4.1 核心研究:7 個 RCT 匯總,複合生物老化指標的效應拆解
研究設計。這是一項已完成試驗的匯總中介分析(pooled mediation analysis),不是新的隨機分派。研究者使用 Wake Forest 的 Integrated Aging Studies Databank,篩選條件是:(1) 至少含一個以誘發 CR 為目的的介入臂;(2) 有體重、身體功能與周邊生物標記的縱向測量。最終納入 7 個試驗、829 位受試者,其中 494 人(59.6%)被分配到 CR 相關的介入臂。
| 試驗 | 納入本研究人數 | 生物標記採集間隔(月,平均±SD) | 平均年齡(歲) | 平均 BMI(kg/m²) |
|---|---|---|---|---|
| CLIP | 182 | 7.53 ± 1.02 | 66.94 ± 4.68 | 32.74 ± 4.00 |
| EMPOWER | 61 | 7.30 ± 2.33 | 70.21 ± 3.99 | 35.36 ± 3.62 |
| HALLO-P | 90 | 10.51 ± 1.05 | 67.28 ± 4.93 | 31.71 ± 2.87 |
| IDEA | 283 | 8.15 ± 1.71 | 66.17 ± 6.11 | 33.43 ± 3.68 |
| IM-FIT | 60 | 4.92 ± 0.91 | 69.59 ± 3.60 | 30.30 ± 2.32 |
| INFINITE | 121 | 5.02 ± 0.44 | 69.02 ± 3.46 | 34.63 ± 3.66 |
| MEDIFAST | 31 | 6.83 ± 0.69 | 69.09 ± 3.05 | 35.60 ± 3.06 |
| 合計 | 829 | 7.51 ± 2.08 | 67.53 ± 5.12 | 33.26 ± 3.79 |
全體基線特徵為:女性佔 67.4%、白人佔 82.0%、平均體重 92.34 kg、平均體脂肪率 40.87%。以年齡與 BMI 分布來看,這是一個「中年後期至老年早期、輕度至中度肥胖」的族群——也正好是目前臨床上最常被建議減重、同時最容易因減重而流失肌肉與骨質的族群。
主要結果。以複合指標的五分位加總分為結果變項,CR 的總效應為 −2.2(95% CI −2.9 至 −1.5),7 個試驗各自的估計值全部小於零,方向完全一致。
把「體重變化」放進模型後,CR 的效應縮小為 −1.2(95% CI −2.0 至 −0.3),依然顯著。反過來看,體重變化本身作為預測因子的效應,從每公斤 0.22(95% CI 0.09 至 0.34)縮小到 0.16(95% CI 0.09 至 0.23)。這個「雙向衰減」的模式是中介分析中「兩個變項共享同一條路徑」的典型指紋:CR 與體重彼此搶佔同一部分的變異。
中介比例。經體重中介的間接效應為 −0.94(95% CI −1.40 至 −0.49)。據此估算,只有 48.5%(95% CI 22.6% 至 82.2%)的 CR 效應可以用體重變化解釋。研究者以 100 個插補資料集、每個資料集 1000 次自助重抽樣(bootstrap)估計間接效應的信賴區間,方法上是嚴謹的。
個別標記的拆解。把指標拆開來看,差異相當明顯:
| 生物標記 | CR 組 vs 對照組之平均差異(95% CI) | 經體重中介之間接效應(95% CI) | 中介是否顯著 |
|---|---|---|---|
| CRP | 1.09 mg/mL(0.28, 1.89) | log-CRP:−0.22(−0.31, −0.14) | 是 |
| IL-6 | −0.07 pg/mL(−1.09, 0.94) | log-IL-6:−0.06(−0.12, −0.01) | 是 |
| 胰島素 | 13.34 pmol/mL(6.17, 20.51) | −12.19 pmol/L(−16.26, −8.33) | 是 |
| cystatin C | −0.03 mg/L(−0.08, 0.02) | 未達顯著 | 否 |
| GDF-15 | 15.95 pg/mL(−21.89, 53.79) | 未達顯著 | 否 |
| TNF-R1 | 37.02 pg/mL(−12.42, 86.47) | 未達顯著 | 否 |
這張表透露的資訊比總和分數更多。發炎軸(CRP、IL-6)與胰島素軸的改善確實有很大一部分來自減重——這符合「脂肪組織減少 → 發炎負荷下降 → 胰島素敏感度改善」的既有認識。相對地,cystatin C、GDF-15、TNF-R1 的變化與體重變化沒有穩定的統計關聯,它們的點估計方向不一、信賴區間寬,且 GDF-15 與 TNF-R1 的組間差異本身也未達顯著。
這裡必須誠實指出一個限制:GDF-15 與 TNF-R1 的組間差異未達顯著,並不代表「CR 對它們沒有效」,而是代表「在目前這個樣本數下,效果量相對於個體間變異太小,無法被偵測到」。GDF-15 的基準中位數為 833.00 pg/mL,而組間差異的點估計為 15.95 pg/mL——相對變化不到 2%。相較之下,CRP 的基準中位數為 2.87 mg/L,組間差異 1.09 mg/mL,相對變化達 38%。把這兩個標記放進同一個加總分,雖然在統計上可行,但在臨床可解讀性上需要保留。
限制。(1) 它是匯總式的二手分析,各試驗的 CR 目標、介入方式、介入長度(採集間隔 4.92 至 10.51 個月)與測量時點都不一致;(2) 研究者以「隨機分派」而非「實際達成的熱量赤字」作為主要自變項,使估計值偏向保守;(3) 體重變化以總體重為中介變項,未區分脂肪量與瘦體組織;(4) 中介分析的「無未測量干擾」假設無法檢驗;(5) 中介比例的信賴區間極寬,單一 48.5% 不宜過度解讀;(6) 族群以女性、白人為主,外部推論性受限。
一個值得注意的外部一致性。研究者指出,同一個複合指標曾在另一項針對 100 位心衰竭合併保留型射出分率(HFpEF)老年人的 RCT 中被驗證:該研究中,此指標對 CR 有反應、對運動沒有反應。這提供了兩層訊息:一是這個指標確實能偵測到介入相關的變化;二是它捕捉到的可能是特定於能量限制路徑的訊號,而不是一般性的生活型態改善。這是支持「這個量尺具有鑑別力」的重要旁證,但仍需更多獨立驗證。
4.2 體重回復會把好處收回:CALERIE-2 的後續分析
如果「不靠減重」的部分確實存在,一個自然的問題是:當體重回復時,哪一部分會被收回?2026 年 Diabetes Care 發表的 CALERIE-2 事後分析直接回答了這個問題。
設計。CALERIE-2 原本隨機分派 220 位受試者至 25% CR 組或維持原進食量的對照組,前 6 至 12 個月為減重期,後 12 個月為維持期。這篇事後分析不按隨機分派分組,而是依 12 至 24 個月間的實際體重軌跡分成三組:持續減重(n=58)、體重維持(n=112)、體重回升超過基線 5%(n=20);並以傾向分數加權(propensity score weighting)平衡三組在年齡、性別與隨機分派狀態上的差異。分析對象為有完整資料的 190 人。
結果。三組的基線特徵相當接近(體重 70.3 至 73.3 kg、BMI 25.1 至 25.4 kg/m²),唯一有顯著差異的是 IGFBP-1(p=0.015)與年齡(p=0.030)。
最關鍵的發現是:體重回升組的胰島素曲線下面積(insulin AUC)改善與 IGF-1/IGFBP-1 比值改善被逆轉,而持續減重組則維持了代謝益處,並伴隨更大幅度的生物年齡下降。換句話說,在非肥胖成人身上,CR 對胰島素—IGF-1 營養感測路徑的調節,依賴體重下降的維持。即使是幅度不大的體重回復(超過基線 5%),也足以明顯侵蝕這些適應。
研究者特別強調一個族群層面的意義:工業化國家的成人平均每年增加 0.5 至 1.0 公斤,以脂肪為主。一位 20 歲 BMI 22 kg/m² 的人,可能在 20 年間累積 15 公斤,達到 BMI 約 26.5 kg/m²,仍落在「過重」範圍內。這種漸進式的增加與胰島素阻抗、代償性高胰島素血症呈線性相關,並活化 IGF-1/mTOR 路徑。研究者的結論是:CR 的承諾不在於短期密集的限制,而在於長期維持一個較低、可持續的能量平衡。
怎麼解讀它與 4.1 節的關係。這兩篇並不矛盾,而是互補。4.1 節說的是「在介入期間的短期變化中,約一半的效應不經由體重」;4.2 節說的是「介入結束後,經由體重的那一半,會隨體重回復而反向」。把兩者放在一起,一個合理的臨床訊息浮現:靠體重達成的那一半,需要靠體重維持來保住;不靠體重的那一半,可能對體重波動較不敏感,但我們目前的追蹤資料還不足以證明它會持續多久。
限制。這是事後分析,分組並非隨機。體重回升組(n=20)人數少,且該組在介入初期有最大的熱量減少幅度——這暗示「先激烈限制、後回升」可能與特定的行為型態或代謝反應有關,而非單純的因果效應。傾向分數加權可以平衡已測量的干擾因子,但無法處理未測量的干擾因子。此外,這是一項非肥胖族群的試驗(基線 BMI 25.1 至 25.4 kg/m²),結果不能直接外推到肥胖病人的減重情境。
4.3 CALERIE-2 的其他量尺:代謝適應與醣化生物年齡
CALERIE-2 的生物資料庫在 2025 年之後陸續產出不同面向的分析,其中有兩項對「量尺選擇」這個主題特別有啟發。
(一)代謝適應:能量支出的下降有多少來自器官與組織的縮小?這是一項 CALERIE-2 的附屬研究(ancillary study),在 Pennington Biomedical Research Center 的次樣本中進行(n=42,CR 組 27 人、對照組 15 人),於基線、12 個月與 24 個月進行全身磁振造影(MRI),直接測量各器官與組織的質量。CR 組在 12 與 24 個月分別減輕 9.7 ± 2.2 kg 與 8.9 ± 2.4 kg,對照組則分別增加 1.3 ± 1.8 kg 與 2.7 ± 2.4 kg。睡眠能量消耗(sleeping energy expenditure, SleepEE)在 CR 組顯著下降:12 個月為 −159 kcal/d(95% CI −198 至 −120,p<0.001),24 個月為 −137 kcal/d(95% CI −176 至 −98,p<0.001);組間差異分別為 −162 kcal/d(95% CI −227 至 −96)與 −124 kcal/d(95% CI −189 至 −58)。
研究者以不同預測方程式(僅體重、DXA 的脂肪與非脂肪量、MRI 的器官與組織質量)估算代謝適應量,結果發現納入越多組織層級資訊,CR 組的代謝適應就越明顯(交互作用 28 kcal/d,95% CI 18 至 39,p<0.001)。這是重要的方法學提醒:「代謝適應有多大」部分取決於如何校正身體組成——用什麼當中介變項,會直接決定「獨立於體重」的比例有多大。
(二)醣化生物年齡 GlycAge。另一項 pilot 研究(n=26,來自 CR 組中達成 CR 程度最高者,實際 CR 約 10% 至 40%)以 IgG 的 N-醣基化圖譜建構生物年齡。介入期間的 CR 達成率在前 12 個月約 18%,在 12 至 24 個月降至約 9%。結果顯示:血中補體 C3 蛋白在 12 與 24 個月均顯著下降(p<0.001);IgG 半乳糖化在 24 個月相對於基線較高(p=0.051),且由 12 至 24 個月顯著上升(p=0.016);GlycAge 與 TNF-α(p=0.030)與 ICAM-1(p=0.017)呈正相關。
最值得注意的是:這 26 人的子集中,所有表觀遺傳時鐘都沒有因 CR 而下降,唯一例外是 DunedinPACE(PC-GrimAge 甚至上升)。而且變化的時間點與體重不同步——體重下降最明顯的是基線至 12 個月(約 −10 kg),但 IgG 半乳糖化與 GlycAge 的變化卻發生在 12 至 24 個月、體重幾乎沒變(約 +0.5 kg)的期間。研究者對照大型減重研究 DIOGENES(n=1850)的結果,認為這支持「某些生物老化指標的變化需要更長時間,且不一定與體重同步」。
這兩項分析共同的臨床訊息是:量尺的回應時間(responsiveness time)與體重的回應時間不一樣。如果用 12 週或 6 個月來評估,很可能會低估某些路徑的效益,或高估另一些。這一點在設計介入研究與解讀病人檢驗數據時都必須納入考慮。
4.4 長期 CR 與運動的橫斷面比較:多體學生物年齡
設計。這是橫斷面觀察性研究(非隨機),納入 41 位長期執行 CR 的瘦體型成人(平均約 7 年,範圍 3 至 15 年)、41 位年齡與性別配對的耐力跑者、以及 35 位年齡與性別配對的久坐對照組。另納入 6 位 21 至 27 歲採西式飲食的非肥胖年輕人作為計算生物年齡的參考族群;其中一個子集(12 位 CR、11 位運動、12 位對照)接受多體學分析(大腸黏膜 DNA 甲基化與 RNA 定序、血漿代謝體、糞便菌相)。所有受試者前 6 個月內體重穩定(±2 kg 以內)。
結果。CR 組的 BMI 為 19.2 ± 1.4 kg/m²,明顯低於運動組(22.7 ± 2.4)與對照組(25.5 ± 3.5)。以生物年齡而言:
- CR 組在多項生物年齡指標上低於對照組:phenoBioAge、microbiomeBioAge、DNAmBioAge、hormoneBioAge(校正後 p<0.05)。
- 在傳統的 PhenoAge 加速量(PhenoAA,定義為 PhenoAge 對實際年齡迴歸後的殘差)上,CR 組比對照組低 −2.96 年(p=0.003),而運動組與對照組之間無顯著差異。
- 相反的,Horvath 時鐘的加速量在運動組比對照組低 −2.25 年(p=0.04),CR 組與對照組之間則不顯著。
- 表觀遺傳突變負荷(epigenetic mutation load, EML)的加速量在運動組低於對照組 −4.91 年(p=0.003),也低於 CR 組 −4.04 年(p=0.02)。
BMI 與體脂肪與生物年齡指標的相關性只在部分量尺上顯著(BMI 與 hormoneBioAge;體脂肪與 phenoBioAge、hormoneBioAge)。
解讀與限制。這篇最重要的貢獻是展示了組織特異性:CR 族群的優勢出現在血液與微生物體為基礎的量尺上,運動族群的優勢則出現在以大腸黏膜為基礎的表觀遺傳與轉錄體量尺上,意味著「生物年齡」不是單一數字。但這是橫斷面研究,無法排除反向因果與自我選擇:能長期維持 7 年 CR 的人,本身可能在其他健康行為或體質上就不同。研究者以不依賴參考族群的 Levine PhenoAge 與 Horvath 時鐘做敏感度分析,結果一致,提高了內部一致性,但不改變設計本身的限制。
4.5 表觀遺傳時鐘對介入的反應性:正反兩面的證據
「生物老化指標能不能當介入反應的量尺」這個問題,在表觀遺傳時鐘上有最激烈的爭論。2024 年 10 月之後的文獻提供了正反兩面的資料,值得並列閱讀。
正面證據:一份系統性的介入清單。一篇 2026 年發表的回顧,以系統化檢索找出 41 個人體介入研究(要求介入前後都有次世代時鐘測量,且排除 2018 年之前的文獻),整理出「哪些介入能顯著降低次世代表觀遺傳時鐘」。結果包括:運動、植物為主的飲食、GLP-1 受體促效劑 semaglutide、熱量限制、ketamine、omega-3 脂肪酸、綜合維生素礦物質補充劑、臍帶血漿、以及降膽固醇藥物 pitavastatin。相反地,nicotinamide riboside(NR)、rapamycin、senolytics 等介入在該清單中未顯示可偵測的效果,而血漿置換(plasmapheresis)等治療反而加速了表觀遺傳老化。
與本文主題最相關的是 semaglutide 的數據:一項 32 週隨機試驗中,相對於安慰劑,semaglutide 使 DNAm PhenoAge 降低 −4.9 年、OMICmAge −2.2 年、PC DNAm PhenoAge −3.68 年、PC GrimAge −3.08 年、Systems Age −4.17 年;DunedinPACE 降低 −0.09,相當於老化速率下降 9%。
同一篇回顧也明確寫下方法學警語:平台特異性的噪音會造成時鐘值波動,生理時鐘與急性壓力都可能造成暫時性改變,因此「時鐘值變化」不必然代表「反應性」或「臨床結果改善」。這個警語在後續兩篇陰性研究中得到了實證支持。
陰性證據一:MACRO 試驗。這是一項 12 個月、比較低碳水化合物與低脂飲食的減重 RCT,共 144 位肥胖成人(88.9% 女性、平均年齡 46.86 ± 10.25 歲、平均 BMI 35.44 ± 4.15 kg/m²)。研究測量三種表觀遺傳老化指標(DunedinPACE、PCPhenoAge 加速、PCGrimAge 加速)與一組廣泛的心代謝生物標記。
基線時,DunedinPACE 與多項心代謝標記顯著相關(FDR<0.05),包括胰島素、HOMA-IR、總膽固醇、HDL 膽固醇、CRP、adiponectin 與 ghrelin;PCPhenoAge 加速僅與膽固醇微弱關聯;PCGrimAge 加速與任何標記都無顯著關聯。介入之後,DunedinPACE 的多數基線關聯被削弱,只剩 CRP 與 adiponectin 仍顯著。更關鍵的是:表觀遺傳老化指標的變化與心代謝生物標記的變化之間沒有顯著關聯,也沒有證據顯示它中介了減重對生物標記的效果。
研究者的結論相當直白:DunedinPACE 是一個反映肥胖成人心代謝健康狀態的敏感標記,但作為短期生活型態介入的因果標的或中介變項,其效用受到質疑;「熱量限制可能減弱生物老化的某些表型表現,但短期表觀遺傳老化指標的變化未必能完整反映底層的心代謝變化」。
陰性證據二:BMI 與表觀遺傳老化的跨族群研究。這篇研究結合了三種方法:孟德爾隨機化(Mendelian randomization, MR)、以 NHANES 為基礎的族群分析、以及運動介入前後的分子層級分析。MR 的結果顯示,基因預測的早年 BMI 與多種表觀遺傳時鐘的加速呈因果關聯:IEAA 的 β=0.231(95% CI 0.001 至 0.461,p=0.049)、GrimAA β=0.369(0.157 至 0.581,p=6.52×10⁻⁴)、HannumAA β=0.267(0.045 至 0.49,p=0.019)、PhenoAA β=0.506(0.237 至 0.775,p=2.31×10⁻⁴)。兒童期肥胖也有類似但較小的關聯(β 介於 0.139 至 0.231)。
NHANES 的分析則顯示 PhenoAge 加速隨 BMI 分級遞增:相對於 BMI<25 kg/m²,25 至 30 組高出 β=0.83 年(95% CI 0.66 至 1.00)、30 至 35 組 1.73 年(1.54 至 1.93)、35 至 40 組 2.93 年(2.67 至 3.20)、BMI≥40 組 4.64 年(4.30 至 4.99)。
中介分析顯示身體活動是部分中介因子,可減弱表觀遺傳老化加速,中介比例介於 10.70% 至 16.22%。
這兩篇的意義。把它們與 4.1、4.2 節放在一起,可以得到一個比「時鐘有沒有動」更細緻的問題:表觀遺傳時鐘可能對「體重與代謝狀態的長期累積」很敏感(橫斷面與 MR 證據一致),但對「短期介入造成的變化」不敏感,甚至與其他生物標記的變化脫節。這意味著在設計短期介入研究時,把表觀遺傳時鐘當作主要終點可能有相當高的偽陰性風險;而把它當作長期風險分層的工具,則有較強的支持。
值得注意的是,兩篇陰性研究的設計並不能否定表觀遺傳時鐘的價值,因為它們各自也有明顯限制:MACRO 是一項減重試驗,兩個介入臂都造成體重下降,缺乏「不減重」的對照;而跨族群研究是觀察性與 MR 的組合,MR 的「因果」推論依賴基因工具的效度假設,作者自己也提醒「身體活動的中介角色應謹慎解讀,因為多變項 MR 的設計是為了估計相關暴露的獨立效果,而不是直接建立中介」。
4.6 間歇性斷食的人體證據:把能量赤字與禁食訊號分開
間歇性斷食之所以對本文的主題特別重要,是因為它提供了一個「熱量赤字可能相近、但禁食訊號強度不同」的天然實驗。2024 年 10 月之後有數篇人體研究直接檢驗這一點。
(一)間歇性 vs 每日熱量限制,代謝體年齡的差異。這是一項多發性硬化症(multiple sclerosis, MS)族群的二次分析,整合兩個既有的飲食介入研究:一項是 6 個月修飾型生酮飲食(KDMAD,n=39),另一項是 8 週、比較間歇性熱量限制與每日熱量限制 vs 體重穩定對照的隨機研究(JHU 試驗,n=36,三個組各 12 人,31 人完成)。結果變項是代謝體年齡(mAge)。
- 生酮飲食組:mAge 每月下降 −1.06 年(95% CI −1.85 至 −0.28;p=0.009)。
- 間歇性熱量限制組:相對於對照組,mAge 每月下降 −6.58 年(95% CI −12.92 至 −0.23;p=0.04)。
- 每日熱量限制組:每月 −0.73 年(95% CI −6.48 至 5.02;p=0.80),未達顯著。
最關鍵的細節是:研究明確指出兩個 CR 組之間的體重下降沒有顯著差異。研究者的解讀是——由於體重下降相似,但只有間歇性 CR 帶來顯著的 mAge 下降,這個效果看起來是獨立於體重下降的。他們提出的可能機制包括:間歇性 CR 與生酮飲食可能透過增強酮體生成、改善粒線體功能、以及經由 AMPK 與 mTOR 等營養感測路徑抑制促發炎訊息,觸發每日 CR 所沒有的路徑;此外兩者都會重塑腸道菌相,增加調節免疫、胰島素敏感度與發炎的生物活性代謝物。
研究者的限制聲明相當充分:這是原本並非為 mAge 設計的試驗的二次分析,代謝體面板相對於 mAge 模型所需並不完整;試驗期短,無法評估長期影響;只納入臨床穩定的復發緩解型 MS 病人,無法外推到進展型或臨床活動型病人;且 JHU 組病人使用的是一線治療或未治療。
這篇研究對本文主題的價值在於:它提供了一個「體重變化相似、但生物老化量尺反應不同」的直接對照。這是中介分析之外的另一種拆解方式,而且證據層級是隨機分派(雖然是二次分析)。不過樣本數小(每組 12 人)、單一疾病族群,外推時必須保守。
(二)間歇性斷食與每日熱量限制對肌肉蛋白合成的影響。這是一項隨機、對照的飲食介入試驗,納入 27 位中年(35 至 55 歲)、過重或肥胖(BMI 25 至 35 kg/m²)的男性,先接受 3 天的前導飲食,再進行 10 天的控制飲食介入,分為三組:交替日斷食(ADF,以 62.5% 能量為目標,即 25% 能量的斷食日與 100% 能量的進食日交替)、連續能量限制(CER,62.5% 能量)、以及能量平衡對照(CON,100% 能量)。三組的蛋白質攝取量都配對為 1.0 g/kg/day。
結果:短期間歇性斷食與能量限制都不會損害肌肉蛋白合成率。空腹血漿瘦素在 ADF 與 CER 兩組都下降(p<0.001),而空腹血糖與胰島素在三組之間沒有差異。
這篇的臨床意義在於:它把一個常見的擔憂(斷食會分解肌肉)放在蛋白質攝取配對的條件下檢驗,結果並不支持這個擔憂。但必須注意,這是 10 天的短期試驗、僅 27 位中年男性、且蛋白質攝取特意配對為 1.0 g/kg/day——在老年族群、蛋白質攝取不足、或長期斷食的情境下,結論未必要相同。
(三)限時進食對免疫老化的影響。一項單臂臨床試驗以 30 天、每日 9:00 至 17:00 的 8 小時進食窗口介入(限時進食組 n=49,對照組 n=10)。結果顯示限時進食降低體重、減少 CD4⁺ 老化 T 細胞、改變免疫組庫(immune repertoire),研究者以「更年輕的免疫系統」描述這個變化,並伴隨腸道菌相改變。
但同一篇研究也誠實記錄了代價:肌肉量與基礎代謝率在限時進食後下降。研究者的解釋是「節食本身就會造成肌肉流失與瘦體組織減少,進而降低基礎代謝」,並建議「限時進食合併適當運動與熱量攝取調整,可能是更好的減重方式」。
這是一個重要的平衡點:即使限時進食(一種不必然要求熱量計算的介入)能在免疫老化指標上展現好處,肌肉與代謝率的代價仍然存在。任何以「不靠減重」為賣點的介入,都不能豁免這個代價。
(四)來自血清轉移的機制證據。一項 2026 年發表的體外研究採用了血清轉移生物試驗(serum transfer bioassay):把「執行限時進食者」與「未執行限時進食的年長者」的血清,分別加到人類腦微血管內皮細胞(hCMEC/D3)培養 48 小時,再進行轉錄體分析。
結果顯示,限時進食相關血清在內皮細胞中引發了強健且協調的轉錄重編程:整合性壓力反應(integrated stress response, ISR)/ATF4 軸被活化,mTORC1 訊息被抑制,呈現由合成代謝轉向分解代謝、壓力適應狀態的轉變;同時壓力反應性細胞激素 GDF15 被明顯誘發,粒線體 DNA 編碼的氧化磷酸化成分表現上升,但並未伴隨典型粒線體生合成路徑的活化;上游調節因子分析顯示 ATF4、FOXO 與 KLF 等壓力與代謝相關轉錄因子被協調活化,而 SREBF1/2 等合成代謝調節因子被抑制。
這篇必須明確標示為體外(in vitro)證據——它是把人的血清加到培養的細胞上,不是在人體內觀察到的效果。它的價值在於提供了一個機制上的可檢驗假說:如果 CR/斷食的效益有一部分真的走「循環因子 → 內皮細胞壓力適應重編程」這條路,那麼這條路是由血清中的什麼東西攜帶的?GDF-15、ketone bodies、FGF21,還是其他?這也是解釋「為什麼移除體重變化後效應仍在」的一個候選機制。但它不能回答「這個轉錄變化對病人有沒有好處」。
(五)進行中的研究。一個值得追蹤的設計是 ENSATI 試驗:這是一項隨機對照的平行分組試驗,比較限時進食與熱量限制在「過重或肥胖且合併早期脂肪肝」成人身上改善老化生物標記的效果。這篇目前已發表的文獻是試驗計畫書(protocol)而非結果,其設計強調以表觀遺傳時鐘、多體學、發炎與菌相指標為終點,並採用調適性方案以提升遵從性。這代表研究方向正從「CR 到底有沒有效」轉向「不同能量限制型態的效果是否可區分,以及該用什麼量尺區分」。
4.7 GDF-15:一個方向性難以解讀、但臨床意義明確的標記
GDF-15(growth differentiation factor 15)值得單獨討論,因為它同時出現在核心研究的複合指標中、又是機制研究的主角、卻在介入研究中呈現出方向不一致的行為。
生物學與臨床意義。GDF-15 屬轉化生長因子 β 超家族,是壓力反應性細胞激素,於肝臟、腸道、白色與棕色脂肪、腎臟與胎盤等組織表現。它在肥胖者與老年人身上偏高、與粒線體壓力及營養剝奪相關、在多種老化相關疾病中上升,被認為是「協調生物體對代謝挑戰之系統性反應」的循環訊號;臨床上也是癌症相關惡病質的驅動因子之一(阻斷 GDF-15 或其受體 GFRAL 可減少動物的厭食與體重下降)。
減重手術後的矛盾行為。兩篇 2025 年的研究正好展現了 GDF-15 的難纏之處:
- 一篇針對減重手術的研究(對照組 72 人、肥胖組 144 人)顯示:肥胖者的循環 GDF-15 高於正常體重者(且男性高於女性);肥胖族群中 GDF-15 與體重、BMI、脂肪量、血糖指標、CRP、轉胺酶、三酸甘油酯等呈正相關。接受減重手術後,GDF-15 顯著下降,特別是在有高血壓或第二型糖尿病的病人;術後一年,ΔGDF-15 與 BMI 呈負相關,與超額體重減輕呈正相關。
- 另一篇研究(104 位病人:52 位肥胖且血糖正常、52 位肥胖且葡萄糖耐受不良或第二型糖尿病)則顯示:進行 Roux-en-Y 胃繞道手術後,GDF-15 顯著上升,但這個上升只在術後 8 個月內採集的樣本中顯著,8 至 15 個月的樣本則不顯著,暗示 GDF-15 的上升是術後早期的現象,之後可能回到基線。
兩篇研究的方向相反,但若把時間軸攤開,其實是一致的:GDF-15 對「能量供應狀態」與「手術/代謝壓力」都敏感,上升與下降發生在不同的時間窗。肥胖狀態下它是補償性上升的(有研究提出在營養過剩時,GDF-15 的過度表現是一種負向調節能量平衡的補償機制,而脂肪酸本身可刺激 GDF-15 產生,作為「脂肪酸過載」的感測器);手術後短期因壓力而上升,長期則隨體重與代謝改善而下降。
在老年族群的臨床意義。一篇 2026 年針對衰弱(frailty)的研究,分析 168 位日本 NCGG Biobank 的參與者(61 位 robust、25 位 pre-frail、82 位 frail,平均年齡 77.3 ± 6.1 歲),整合臨床、血液檢驗、老化相關因子與基因表現資料。研究者先在線性迴歸中找出與衰弱相關的因子,再針對日本版心血管健康研究(J-CHS)的五個成分(非刻意的體重減輕、自述疲憊、肌力變弱、行走變慢、低身體活動量)做邏輯迴歸,最終以交叉驗證精煉出三個候選生物標記:SMI(骨骼肌量指標)、apelin 與 GDF15,在預測未來肌力變弱上的 concordance index 為 0.70。
這個發現對本文的主題有一個直接的警示:GDF-15 上升不必然是好事。它在老年族群中與衰弱、肌力變弱、體重減輕相關。因此,當 CR 或斷食研究中觀察到 GDF-15 上升,我們不能立刻把它解讀為「抗老化效果」。可能它是壓力適應的訊號,也可能它只是能量不足與肌肉流失的標記。核心研究把 GDF-15 放進複合指標、且其組間差異未達顯著、中介效果也不顯著,用「保留」的態度看待它會比用「改善」的態度更保守合理。
4.8 單純減重路徑:GLP-1 受體促效劑與減重手術的對照
要回答「CR 的效益有多少只是因為變瘦」,最外部的對照就是:其他造成體重下降的手段,能不能複製同樣的生物老化指標改善?2025 年之後,這條路徑的資料快速累積。
(一)Semaglutide 與表觀遺傳時鐘(隨機試驗的事後分析)。這是一項 32 週、隨機、雙盲、安慰劑對照的第二期 b 試驗,原目的為評估 semaglutide 對 HIV 相關脂肪增生(lipohypertrophy)病人脂肪組織量與分布的影響;納入 18 歲以上、HIV-1 感染、ART 穩定至少 12 週、病毒量控制良好且 BMI≥25 kg/m² 者。154 人接受資格評估,108 人被隨機分派(每組 54 人),每組各 8 人(15%)提前退出;前 8 週為劑量遞增期,之後 24 週維持 1.0 mg。
這項試驗的事後表觀遺傳分析顯示:semaglutide 治療導致多種次世代時鐘的改善,效果最明顯的是預測罹病率與死亡率的第二代時鐘,以及測量老化速率的 DunedinPACE。研究者指出,這個訊號與 CALERIE 熱量限制試驗及 DO-HEALTH 多模式生活型態介入所觀察到的表觀遺傳時鐘訊號相似,支持「代謝調節可影響老化路徑」的整體概念。
(二)SLIM LIVER 的 pilot 分析。另一項 pilot 研究分析了 SLIM LIVER 試驗中 51 位受試者裡有可評估樣本的 41 人(中位年齡 52 歲、中位 BMI 35 kg/m²、中位 HOMA-IR 3.8、ALT 上升者佔 53%),評估 24 週 semaglutide 治療期間,DunedinPACE、PCGrimAge 與 PCDNAmTL 的變化與人體測量、代謝與身體功能變化的關聯。結果顯示:DunedinPACE 的老化速率減緩與較大幅度的肝臟脂肪減少相關;PCGrimAge 的變化則與人體測量或代謝結果無關聯;而端粒長度指標 PCDNAmTL 的上升與步態速度改善相關。值得注意的是,該研究並未觀察到 DunedinPACE 變化與體重或 BMI 的關聯。
研究者的結論相當節制:這些發現「值得在更大型世代與獨立研究中進一步驗證表觀遺傳年齡生物標記作為 GLP-1 受體促效劑治療反應指標的效用」。
(三)肌肉的爭議:GLP-1 藥物是否造成不成比例的肌肉流失?這是「單純減重路徑」最受關注的安全議題。一項 2026 年的研究同時做了小鼠實驗與人體 pilot 試驗:以每日皮下注射 tirzepatide(50 μg/kg)或賦形劑治療飲食誘導肥胖小鼠 14 天,結果體重下降約 35%、體脂肪下降 73%、瘦體重(LBM)下降 13%;LBM 的下降貢獻了總體重下降的約 20%。採集的五條下肢肌肉中只有兩條顯著減少質量(各約 10%)。但由於體重下降的幅度超過肌肉質量下降的幅度,相對於體重的肌肉比例(relative muscle mass)在 EDL、蹠肌與腓腸肌顯著改善,在脛前肌與股四頭肌則有改善趨勢。所有白色脂肪庫下降約 50% 至 70%。在人體 pilot 試驗中,肌肉強度在 GLP-1 受體促效劑治療期間得以維持。
研究者特別強調一個關鍵對照:在體重變化相似的情況下,GLP-1 受體促效劑對肌肉蛋白質體(proteome)的影響與熱量限制不同。這意味著不同路徑造成的體重下降,在組織層面上並不「等價」——這與本文的主題方向一致,只是把「等價性」的問題從生物老化指標移到肌肉。
另一篇 2026 年的範疇回顧整理了 GLP-1 受體促效劑在老年族群的肌少症風險。可引用的數字包括:網絡統合分析顯示 GLP-1 受體促效劑組瘦體重下降幅度大於對照組(平均差異 −0.86 kg,95% CI −1.30 至 −0.42);停藥後體重回復可達原減去體重的 75.6%(95% CI 68.5% 至 82.7%),一年後約保留 40.2%;體重循環的前瞻研究則顯示體重回復時身體組成發生不利轉換——脂肪量回到基線,但非脂肪量下降 1.50 kg(95% CI 0.66 至 2.35)。實務建議是整合阻力運動與飲食諮詢,並確保蛋白質攝取 1.2 至 1.6 g/kg/day。
(四)怎麼把這條路徑與 CR 放在一起讀。把 4.1 節與 4.8 節並列,可以得到一個比「GLP-1 也好、CR 也好」更精確的圖像:
- 在生物老化指標上,單純減重路徑確實能產生訊號(semaglutide 使 DNAm PhenoAge 降低 4.9 年、DunedinPACE 降低 9%),這支持「體重與代謝狀態的改善本身就會反映在老化量尺上」。
- 但兩條路徑的組織層面效果不等價:體重變化相似的情況下,GLP-1 受體促效劑與熱量限制對肌肉蛋白質體的影響不同。這提醒我們,把「減重多少」當成唯一的中介變項,在生物學上過於粗糙。
- 兩者都面臨體重回復的風險:CALERIE-2 顯示體重回復逆轉了胰島素—IGF-1 路徑的改善;GLP-1 停藥後的資料顯示體重回復時會出現「脂肪回來、非脂肪量掉下去」的不利轉換。
因此,從「有多少效益獨立於減重」這個角度看,單純減重路徑的存在並不是反駁,而是提供了對照組:它讓我們知道,如果一個人的改善完全走體重路徑,效果應該長什麼樣,以及它會在哪裡失效。
4.9 機制的人體證據:AMPK/mTOR/sirtuins 與自噬
CR 與間歇性斷食在人體上的分子訊號,目前最完整的整理來自一篇 2025 年的整合性批判回顧。該回顧從 2132 筆初始紀錄開始,經去重(282 筆)與標題摘要篩選(排除 1728 筆),最終 96 篇進入全文評估、39 篇被排除,57 篇納入質性綜合。
這些文獻反覆出現的共同結論是:CR 與間歇性斷食在人體上都能活化 AMPK、活化 sirtuins、抑制 mTOR 訊息、並顯著誘發自噬,並伴隨胰島素敏感度改善、氧化壓力下降、發炎標記減弱與表觀遺傳老化指標減速。兩者的差異在於:CR 較明顯降低 IGF-1,間歇性斷食較明顯提高酮體。
同一篇回顧也提出一個值得注意的概念工具:它強調相關血清標記(空腹血糖、HbA1c、HOMA-IR、TG/HDL-C 比值、apoB、hs-CRP、IL-6,以及脂肪激素與肝酵素)用於代謝風險分層,而老化相關生物標記(DNA 甲基化時鐘、循環 GDF-15)提供互補資訊。已在人體觀察到的組合模式是:相較於年輕族群,老年人通常呈現較高的 IL-6/CRP 與 GDF-15,以及較低的 IGF-1。
另一篇 2026 年的回顧則從「抗老化介入的分類框架」角度切入,把現有策略依主要生物標靶分為六類(代謝調節、慢性發炎控制、老化細胞治療、異時共生、幹細胞治療、表觀遺傳年輕化),並指出 CR、運動與運動模擬劑(如 metformin)都作用在 AMPK 這條軸線上。該回顧同時記錄了一個臨床現實:mTOR 抑制劑的常見不良反應包括感染風險增加、胰島素阻抗與傷口癒合受損,因此若要長期使用以延緩老化,這些副作用必須被妥善管理。這是評估任何「抗老化介入」時都必須放在同一張天秤上的另一邊。
證據層級提醒。上述機制大多來自橫斷面的人體組織測量或體外模型,其因果地位尚未在人體中確立。它們的角色是提供可信的機制假說,解釋為什麼中介分析中會出現殘餘的直接效應,而不是證明這條路徑一定帶來臨床獲益。
4.10 另一側的天秤:熱量限制的風險
如果把「獨立於減重的效益」當成推動 CR 或斷食的理由,就必須同時誠實呈現代價。2024 年 10 月之後的文獻在這方面的資訊相當明確。
(一)骨質。一篇 2025 年的回顧專門檢視減重介入對肥胖者骨骼健康的影響。核心訊息是:熱量限制與減重手術都會造成高週轉率的骨質流失;與單純熱量限制不同的是,減重手術後的病人會出現骨微結構與骨強度的實質惡化,並伴隨骨折風險增加,尤其是吸收不良型手術。風險的機制被歸納為多個層面:營養因子、機械性卸載、荷爾蒙因子、脂肪激素、以及腸道菌相改變;而用於預防與治療手術後骨質疏鬆的建議已經存在,抗骨質疏鬆藥物預防骨質流失的療效也已在兩項隨機對照試驗中被評估。
關於運動的角色,該回顧敘述相當節制:有理由嘗試以運動減緩熱量限制期間的骨質流失,但目前資料顯示效果大概是溫和的——有氧或阻力運動可預防全髖部面積骨密度約 −2% 的流失(股骨頸約 −0.88%),脊椎約 −0.5%。關於 GLP-1 受體促效劑,齧齒類模型中 liraglutide 對骨骼有正向作用,但多數正向效果是在遠高於人類肥胖治療核准劑量的濃度下觀察到的,人體骨骼影響仍不確定。
(二)肌肉與功能。如 4.8 節所述,瘦體重的流失是 GLP-1 藥物與熱量限制共同面臨的問題。2025 年的一篇 workshop 摘要明確指出,老年肥胖族群的飲食介入必須在「減重的心代謝益處」與「肌肉與骨質的非預期流失」之間取得平衡,這是該領域公認的核心張力。
關於蛋白質的角色,一項整合三個 RCT 的二次資料分析提供了相對務實的答案:191 位 55 歲以上、BMI≥25 kg/m² 的老年人(平均年齡 65.1 歲、平均 BMI 32.9 kg/m²),納入為期 10 或 13 週的減重計畫,全部搭配阻力訓練。蛋白質攝取在接受補充或飲食指導的族群中由 0.87 提升至 1.06 g/kg/day(p<0.001)。結果顯示:較高的蛋白質攝取與四肢瘦體組織量(ALST)增加顯著相關(β=1.0,p=0.047),但與體重、體脂率、握力、步態速度、椅子起立測試與 SPPB 均無關聯。
這個結果值得仔細讀:蛋白質補充在這個族群中保住了肌肉量,但沒有改善功能與體能表現。研究者自己也指出,還需要更高品質的研究才能確定這個族群的最佳蛋白質攝取量。對臨床的意涵是:不要把「補充蛋白質」當成萬靈丹,它可能保住質量,但不保證保住力量。
(三)免疫與感染。2026 年一篇關於間歇性斷食與免疫老化的敘性回顧整理了正反兩面的資料。正面部分包括:臨床上觀察到免疫細胞表型的有利轉變、免疫老化標記下降、腸道菌相多樣性增加、心代謝風險因子改善;齋戒月型間歇性斷食與較低的 IL-6、IL-1β、TNF-α 相關,並伴隨 SIRT1/AMPK 上調與內臟脂肪減少。負面部分,回顧也強調在衰弱與老年族群中證據仍然有限,並明確指出一項未伴隨熱量限制的限時進食方案造成了四肢瘦體組織量的流失,這是對肌少症風險族群的警示。
回顧提出的未來研究方向包括:大型、設計良好、在多元老年族群中進行的 RCT;依年齡、衰弱狀態與性別分層;納入老年人相關的結果(身體功能、生活品質、免疫生物標記、感染風險);以及標準化斷食的定義與免疫/認知結果的測量方式。這些都是目前證據不足的具體缺口。
(四)生殖功能。一篇 2025 年的回顧專門探討 CR 與男性生殖健康的關係,並聚焦 sirtuins 的角色。其敘述明顯偏向機制與臨床前層級:sirtuins 可透過與下視丘—腦下垂體—性腺軸的交互作用以及對粒線體動態的影響,調節睪丸功能與男性生育力的多項代謝過程,但這些「在很大程度上仍未被充分探索」。該回顧並未提供足夠的人體介入證據來支持「CR 改善或損害男性生育力」的結論,因此本文僅將其列為需要監測的潛在風險面向,不作效果宣稱。
4.11 動物與體外研究的位置:證據分級
基於本刊的慣例,以下研究必須明確標示為動物或體外證據,不得與人體結果並列。
(一)小鼠分級熱量限制與表觀遺傳老化(動物)。研究者以雄性 C57BL/6J 小鼠為對象,從 5 個月齡起給予五種不同程度的熱量限制(自由進食、10%、20%、30%、40%)持續 19 個月,共 33 隻小鼠存活至 24 個月齡並進行肝臟 DNA 甲基化分析,另以 8 個月齡的自由進食小鼠作為參考點,共測量 2045 個 CpG 位點。結果顯示:在 40% CR 組的 24 個月齡小鼠中,DNA 甲基化向 8 個月齡自由進食小鼠的數值移動,推估出的有效表觀遺傳年齡約為 12 個月,顯示表觀遺傳老化速率的減緩。部分 CpG 位點的甲基化對葡萄糖耐受不良與循環胰島素濃度敏感,與營養感測路徑對老化的影響一致;在多個 CpG 位點顯著變化的基因中,有 9 個與肝細胞癌的促進或抑制相關,3 個與其他癌症相關。
這篇研究的價值在於展示了「熱量限制的程度與表觀遺傳老化的減緩呈劑量關係」,這在人體上極難直接檢驗。但它是單一物種、單一性別、單一組織(肝臟)的動物研究,且作者自己也聲明:「這個效果是否為 CR 延長壽命的因果原因、以及其發生的機制,仍是未解的問題。」
(二)交替日斷食與腸道幹細胞(動物)。研究者以 28 個月齡的自然老化小鼠模型,發現小腸屏障功能與消化吸收受損的主要原因是腸道幹細胞數量與再生能力下降,其底層機制涉及幹細胞粒線體功能退化導致能量供應不足。研究進一步顯示,交替日斷食可以恢復腸道幹細胞的數量與再生能力,對小腸展現出明顯的抗老化效果。
這是一篇典型的機制型動物研究。它的角色是提示「斷食可能透過幹細胞層級的作用影響器官老化」,但不能推論到人類的腸道功能或生物老化指標。本文將其列出的目的是讓讀者理解,許多被引用來支持斷食的「抗老化」說法,其來源層級是動物模型。
(三)體外血清轉移實驗。已於 4.6 節(四)說明。
五、臨床實務建議
以下建議是基於本文所整理的證據所做的一般性原則整理,不構成對個別患者的治療建議。
5.1 不要用體重當唯一終點,但也不要放棄體重
核心研究的數字給了我們一個可操作的框架:在老年肥胖族群的 CR 介入中,複合生物老化指標的改善約一半經由體重、約一半不經由體重。這意味著:
- 體重仍然是必要的中介目標。4.2 節的資料顯示,體重回復會逆轉胰島素—IGF-1 路徑的改善,因此「維持」比「減下來」更關鍵。以「可持續的能量平衡」為目標,比追求短期最大幅度減重更符合證據。
- 但體重停滯不等於介入失敗。在體重已達標、或體重無法再下降的病人身上,若我們只追蹤體重,可能會錯過仍在發生的生物層面改善,也可能因此過度加壓、增加骨質與肌肉的風險。
5.2 如果要使用生物老化量尺,怎麼選、怎麼解讀
目前的證據支持以下的分層使用方式:
| 量尺 | 對介入的短期反應性 | 與臨床硬終點的連結 | 建議用途 |
|---|---|---|---|
| 複合生物標記指標(CRP/IL-6/cystatin C/insulin/GDF-15/TNF-R1 之五分位加總) | 已在 7 個 RCT 中驗證(n=829) | 與老化相關生物軸線對應,但仍屬研究性 | 研究情境下評估 CR 型介入的反應;已有初步跨族群一致性證據 |
| DunedinPACE 等次世代表觀遺傳時鐘 | 訊號不一致:可被 CR、semaglutide 改變,但在減重 RCT 中與其他標記脫節 | 與死亡率風險關聯較第一代時鐘強 | 長期風險分層;短期介入研究宜設為次要終點 |
| 代謝體年齡(mAge)、GlycAge | 在多發性硬化症族群與 CALERIE 子集中顯示反應性 | 驗證資料較少 | 有研究價值,臨床上尚不宜單獨作為決策依據 |
| CardioMetAge | 2 年 CR 相對於自由進食可減緩 1.23 年(95% CI 0.61 至 1.84) | 心代謝死亡之 HR 每 SD 為 1.87(1.83 至 1.91) | 以常規生化指標即可計算,臨床可及性最高 |
特別值得指出的是 CardioMetAge:它只需要年齡、HbA1c、RDW、收縮壓、肌酸酐、BUN、CRP、腰圍等 12 項常規臨床指標,已在三個世代(NHANES-III 13,262 人、連續 NHANES 31,745 人、UK Biobank 418,118 人)完成訓練與驗證,與心代謝死亡及發病的關聯優於 PhenoAge 等模型。對無法進行甲基化檢測的單位而言,這是目前可及性與證據強度平衡最好的選項之一。
5.3 三個必須同時處理的保護措施
無論採用 CR、限時進食或藥物性減重,以下三項在文獻中都有一致的支持:
- 蛋白質攝取。在老年減重族群中,蛋白質 1.2 至 1.6 g/kg/day 與較低的肌少症風險相關;在三個 RCT 的二次分析中,蛋白質攝取由 0.87 提升至 1.06 g/kg/day 與四肢瘦體組織量增加顯著相關(β=1.0,p=0.047)。但同一分析顯示這沒有轉譯為握力、步態速度或 SPPB 的改善,因此蛋白質應被視為「保住質量」的基本措施,而不是功能保證。
- 阻力訓練。文獻一致建議將阻力運動與任何能量限制介入併用。在骨質方面,運動可減緩熱量限制期間全髖部與股骨頸的面積骨密度流失(幅度溫和);在 GLP-1 藥物情境中,專業學會的建議同樣是整合阻力運動與飲食諮詢。
- 骨質與肌肉的基線評估與追蹤。由於熱量限制與減重手術都會造成高週轉率骨質流失,且減重手術後的骨微結構惡化與骨折風險上升有明確證據,建議在介入前建立骨密度、肌肉量與功能(握力、步態速度、椅子起立測試、SPPB)的基線,並在介入期間定期追蹤。
5.4 間歇性斷食的實務定位
目前的證據對間歇性斷食的支持是「有條件且方向性明確,但強度有限」:
- 支持的部分:在多發性硬化症族群中,間歇性熱量限制與每日熱量限制在體重下降幅度無顯著差異的情況下,只有間歇性斷食帶來代謝體年齡的顯著下降(每月 −6.58 年,p=0.04)。在 10 天、蛋白質配對為 1.0 g/kg/day 的條件下,交替日斷食未損害肌肉蛋白合成率。
- 必須保留的部分:上述兩項研究的樣本數都小(每組 12 人;27 位中年男性)。此外,一篇敘性回顧指出,未伴隨熱量限制的限時進食曾造成四肢瘦體組織量流失;另一項 30 天、8 小時進食窗口的單臂試驗雖顯示免疫老化指標(CD4⁺ 老化 T 細胞)下降,但同時觀察到肌肉量與基礎代謝率下降。
合理的實務立場是:間歇性斷食可以作為達到並維持能量赤字的一種有效且可接受的工具,其可能的額外效果與禁食期間的營養感測訊號有關,但目前尚不足以宣稱它在生物老化上優於等量的每日熱量限制。使用時應以蛋白質足量與阻力訓練為前提。
5.5 誰不適合,以及什麼時候該停
以下情境在文獻中反覆被列為需要特別謹慎或避免的:
- 體重已屬正常範圍者。CALERIE-2 的受試者為 BMI 22.0 至 28.0 kg/m² 的非肥胖健康成人。即使在這個族群中觀察到代謝與生物老化指標的改善,仍須面對骨質、肌肉、免疫功能與生殖功能的潛在代價。對於體重正常、且無代謝異常的人,推動進一步熱量限制的風險效益比需要個別評估。
- 衰弱或有肌少症風險的老年人。GDF-15 在老年族群中與衰弱與肌力變弱相關(concordance index 0.70),而長期斷食的動物研究雖顯示幹細胞層級的益處,人體在衰弱族群的證據仍明顯不足。回顧文獻明確要求未來研究必須依衰弱狀態分層。
- 骨質疏鬆或高骨折風險者。減重與減重手術相關的骨流失已有明確證據,介入前應完成骨質評估。
- 體重回升。依 CALERIE-2 的後續分析,體重回升超過基線 5% 就足以逆轉胰島素—IGF-1 路徑的改善。因此監測體重軌跡與及早介入,比追求更大幅度的初次減重更重要。
六、未來展望
從這批文獻可以看出,這個領域正從「CR 有沒有效」推進到「效果的哪一部分來自哪裡,以及該用什麼量尺測量」。以下幾個方向值得追蹤。
(一)真正能分離兩條路徑的試驗設計。目前最強的證據仍是統計上的中介分析,其核心假設無法檢驗。要真正分離「體重路徑」與「營養感測路徑」,需要:等熱量但禁食時間不同的設計(例如即將有結果的 ENSATI 這類限時進食 vs 熱量限制的比較);或是等體重變化但營養感測訊號不同的設計(例如生酮/斷食 vs 標準飲食)。這類設計的存在,比任何統計拆解都更能回答本文的問題。
(二)量尺的標準化與回應時間的建立。目前的困境是:不同量尺對同一介入的反應不一致(複合生物標記指標有反應、PhenoAge 類時鐘反應有限、DunedinPACE 反應不一致、醣化生物年齡的變化落後體重變化 12 個月)。領域需要的不只是「哪個量尺比較好」,而是每個量尺在什麼時間窗、針對什麼介入、預期多大的效應量。CALERIE-2 的資料庫正在為此累積基礎。
(三)生物標記變化到臨床結果的橋接。這一環目前最薄弱。一個警示性的數字來自發炎路徑:CANTOS 試驗中 canakinumab 大幅降低 hsCRP 與 IL-6,卻未降低新發糖尿病的發生率(HR 1.02,95% CI 0.87 至 1.19,p=0.82)。這提醒我們,把發炎生物標記壓下去,不必然等於臨床獲益;任何以生物標記為終點的建議,最終都必須由硬終點試驗驗證。
(四)劑量、時間與族群特異性。小鼠的分級 CR 研究顯示表觀遺傳老化的減緩與 CR 程度呈劑量關係,但這在人體無法直接檢驗。長期 CR 與運動的橫斷面研究則顯示明顯的組織特異性。這意味著「生物年齡」未來可能不是一個數字,而是一組按組織或系統區分的指標組合。
(五)肌肉與骨質的保護策略。GLP-1 藥物與熱量限制對肌肉蛋白質體的影響不同、以及停藥後「脂肪回來、非脂肪量下降」的不利轉換,指向一個具體的研究需求:能否在減重期間同時保護肌肉質量與功能?目前蛋白質補充的證據只支持保住質量,功能層面的證據仍缺。
回到最初的問題:熱量限制與間歇性斷食的好處,有多少獨立於減重?以目前最好的證據回答,大約是一半——但這個「一半」的信賴區間從四分之一跨到五分之四。更誠實的說法是:減重是一條必要但不充分的路徑。我們已經有足夠的證據拒絕「CR 的好處全部來自變瘦」這個簡化說法,也已經有工具開始測量另一條路徑;但要把這個比例變成可以對個別病人使用的預測工具,還需要能真正分離兩條路徑的試驗設計,以及生物標記與臨床硬終點之間更穩固的橋接。
參考文獻(均已全文查閱)
以下文獻均經取得全文並逐篇閱讀後引用;僅取得摘要者不予列入。文獻排序依本文首次引用之順序。
- Guida CA, Hsu FC, Neiberg R, et al. Impact of caloric restriction on biological aging: insights from a composite biomarker index in older adults. Geroscience. 2026;. PMID: 42730911
- Warmbrunn MV, Yang L, Kishore Biswas R, et al. Weight Regain Reverses Caloric Restriction-Induced Benefits on the Insulin-IGF-1 Nutrient-Sensing Pathway: Post Hoc Analysis From the CALERIE-2 Randomized Controlled Trial. Diabetes Care. 2026;49(5):783-791. PMID: 41838032
- Pribić T, Das JK, Đerek L, et al. A 2-year calorie restriction intervention may reduce glycomic biological age biomarkers - a pilot study. NPJ Aging. 2025;11(1):71. PMID: 40750782
- Falkenhain K, Redman LM, Chen W, et al. Effect of caloric restriction on organ size and its contribution to metabolic adaptation: an ancillary analysis of CALERIE 2. Sci Rep. 2025;15(1):30374. PMID: 40830369
- Fiorito G, Tosti V, Polidoro S, et al. Multi-omic analysis of biological aging biomarkers in long-term calorie restriction and endurance exercise practitioners: A cross-sectional study. Aging Cell. 2025;24(4):e14442. PMID: 39692728
- Kou M, Li X, Heianza Y, et al. Epigenetic Age Acceleration and Cardiometabolic Biomarkers in Response to Weight-Loss Dietary Interventions Among Obese Individuals: The MACRO Trial. Aging Cell. 2025;24(11):e70224. PMID: 40922554
- Zhou B, Wu D, Chen S, et al. Body mass index, physical activity, and epigenetic aging: a cross-population study. Clin Epigenetics. 2026;18(1). PMID: 42104437
- Johnson AA, Sinclair DA. Turning back time: a comprehensive list of interventions that decrease next-generation epigenetic aging clocks in humans. Front Genet. 2026;17:1836446. PMID: 42294499
- Moulds TP, Mitchell SE, Yang X, et al. Graded Calorie Restriction Causes Graded Slowing of Epigenetic Ageing in Mice. Aging Cell. 2026;25(1):e70342. PMID: 41432313
- Li Y, Xu X, Zheng Y, et al. CardioMetAge estimates cardiometabolic aging and predicts disease outcomes. BMC Med. 2026;24(1). PMID: 41620721
- Celada-Guerrero JA, Rubio-Gordón L, Jiménez-Perez Y, et al. Time-restricted eating versus calorie restriction for improving biomarkers of age in adults with overweight or obesity and incipient fatty liver disease: protocol for the ENSATI randomized controlled parallel groups trial. Front Endocrinol (Lausanne). 2026;17:1849550. PMID: 42369048
- Chen Y, Li X, Yang M, et al. Time-restricted eating reveals a "younger" immune system and reshapes the intestinal microbiome in human. Redox Biol. 2024;78:103422. PMID: 39561680
- Ekambaram S, Kiss T, Ungvari Z, et al. Circulating factors induced by time-restricted eating drive metabolic reprogramming in endothelial cells. Geroscience. 2026;48(5):6541-6560. PMID: 42496831
- Siavoshi F, Smith MD, Cassard S, et al. Fasting Mimicking Diets Reverse Accelerated Biological Aging in Multiple Sclerosis. Ann Neurol. 2025;98(6):1278-1282. PMID: 40970462
- Quan H, Lu Y, Lin Y, et al. Alternate Day Fasting Enhances Intestinal Epithelial Function During Aging by Regulating Mitochondrial Metabolism. Aging Cell. 2025;24(7):e70052. PMID: 40168185
- Urones P, Juiz-Valiña P, Outeiriño-Blanco E, et al. Relevance of GDF15 as a biomarker for clinical outcomes after bariatric surgery. J Endocrinol. 2025;266(1). PMID: 40530451
- Salmón-Gómez L, Catalán V, Ramírez B, et al. Differential effects of bariatric surgery on circulating GDF15 and FGF21 levels: Implications for glycemic status and weight loss outcomes. Eur J Clin Invest. 2025;55(10):e70069. PMID: 40377893
- Yamakawa A, Hosoyama T, Takemura M, et al. Validation and refinement of a biomarker panel for frailty assessment and prediction of muscle weakness in older adults. NPJ Aging. 2026;12(1). PMID: 42754586
- Corley MJ, Dwaraka VB, Pang AP, et al. Semaglutide slows epigenetic aging in a randomized trial of HIV-associated lipohypertrophy. Nat Commun. 2026;17(1). PMID: 42156721
- Corley MJ, Pang APS, Kitch DW, et al. Pilot study of epigenetic aging and treatment response to semaglutide in the SLIM LIVER study. NPJ Aging. 2026;12(1). PMID: 42014432
- Langer HT, Gilmore NK, Hayden CMT, et al. Weight loss with GLP-1 medicines does not result in a disproportionate loss of muscle mass or function in obese mice and humans. Cell Rep Med. 2026;7(3):102665. PMID: 41850248
- Kouw IWK, Parr EB, Wheeler MJ, et al. Short-term intermittent fasting and energy restriction do not impair rates of muscle protein synthesis: A randomised, controlled dietary intervention. Clin Nutr. 2024;43(11):174-184. PMID: 39418832
- Eglseer D, Reiter L, Schoufour JD, et al. Is higher protein intake during weight loss interventions in older adults associated with improved outcomes? A secondary data analysis of three randomised controlled trials. Nutr J. 2026;25(1):24. PMID: 41572290
- Murillo-Cancho AF, Lozano-Paniagua D, Nievas-Soriano BJ. Dietary and Pharmacological Modulation of Aging-Related Metabolic Pathways: Molecular Insights, Clinical Evidence, and a Translational Model. Int J Mol Sci. 2025;26(19). PMID: 41096907
- Li F, Wang Y, Wang G, et al. A Mechanism-Based Framework for Anti-Aging Strategies: From Metabolic Regulation to Senotherapy and Stem Cell-Based Interventions. Aging Cell. 2026;25(9):e70658. PMID: 42661334
- Simsek H, Ucar A. GLP-1 Receptor Agonists for Obesity Management in Older Adults: A Scoping Review on the Risk of Sarcopenia and Sarcopenic Obesity. Curr Nutr Rep. 2026;15(1). PMID: 42303931
- Mechanick JI, Butsch WS, Christensen SM, et al. Strategies for minimizing muscle loss during use of incretin-mimetic drugs for treatment of obesity. Obes Rev. 2025;26(1):e13841. PMID: 39295512
- Alkawamleh D, Madkour MI, Kalam F, et al. Intermittent fasting and immune aging: implications for immunosenescence, inflammaging, neuroinflammation, and frailty. Front Nutr. 2026;13:1736969. PMID: 41646173
- André DCA, Oliveira PF, Alves MG, et al. Caloric Restriction and Sirtuins as New Players to Reshape Male Fertility. Metabolites. 2025;15(5). PMID: 40422880
- Paccou J, Gagnon C, Yu EW, et al. Effects of weight-loss interventions on bone health in people living with obesity. J Bone Miner Res. 2025;40(12):1319-1331. PMID: 41042228
- Shea MK, Lynch SD, Brinkley TE, et al. Nutrition and Aging Biology: Summary of a Research Centers Collaborative Network Workshop and Research Needs. Curr Dev Nutr. 2025;9(7):107485. PMID: 40697195
- Ayoub NR. Therapeutic Targeting of Inflammaging and Emerging Strategies for Managing Age-Related Multimorbidity: A Narrative Review. Clin Interv Aging. 2026;21:620882. PMID: 42781074
- de Cuevillas B, Cuevas-Sierra A, Higuera-Gómez A, et al. Baseline Ferritin and Body Composition as Correlates of Longitudinal Metabolic Changes During an Energy-Restricted Mediterranean-Style Intervention Across Three Overweight Phlogistic-Related Clinical Conditions. Nutrients. 2026;18(18). PMID: 42797027
本文整理自 PubMed 索引之同儕審查文獻全文,僅供醫療專業人員參考,不構成個別患者之治療建議。
近期留言